近日,天天a片
梨创新团队在Plant Biotechnology Journal杂志在线发表了题为"PbSnRK1-Mediated Phosphorylation of PbTCP13 Regulates Glucose-Responsive Lignin Biosynthesis via PbMYB11 During Pear Stone Cell Formation"的研究论文。该研究揭示了能量感受器PbSnRK1通过磷酸化转录因子PbTCP13,调控其与木质素合成激活因子PbMYB11的相互作用,从而构成一个受葡萄糖浓度精细调控的分子开关,为理解果树次生细胞壁代谢的能量-碳分配偶联机制提供了新见解。
梨(Pyrus)是世界上重要的温带水果作物,其中亚洲梨约占全球梨总产量的70%,但其果肉中含有较多石细胞(stone cells),影响了果实的口感。石细胞由薄壁细胞经次生细胞壁增厚和木质素沉积形成,过高的石细胞含量会降低消费者接受度和加工适性(Tao et al., 2009; Jin et al., 2013)。因此,阐明石细胞木质素生物合成的调控机制对梨果实品质遗传改良具有重要意义。木质素生物合成受多种转录因子协同调控(Gong et al., 2024),同时也是一个整合发育程序与环境、代谢信号的精密过程,其中葡萄糖既作为碳源前体,又作为信号分子参与调控木质素沉积的时空模式(Rolland et al., 2006; Lastdrager et al., 2014)。已有研究表明,外源葡萄糖可剂量依赖性地促进梨愈伤组织和葡萄茎段的木质素积累(Jiao et al., 2022; Wang et al., 2024)。然而,植物细胞如何感知葡萄糖浓度变化并将其转化为木质素合成的转录指令,其分子机制尚不清楚。
SnRK1(SNF1-related protein kinase 1)是进化保守的细胞能量感受器,其活性与细胞糖状态紧密偶联,在低能量条件下被激活,在高糖条件下被抑制(Baena-González et al., 2007; Wang et al., 2019)。已有研究表明,SnRK1可通过磷酸化特定转录因子调控木质素合成(Yan et al., 2024; Luan et al., 2025),但其在多年生果树石细胞木质化中的直接底物与调控机制此前并不清楚。TCP转录因子和R2R3-MYB转录因子也参与调控木质素生物合成(Zhong et al., 2008; Sun et al., 2017; Zhang et al., 2025),但TCP蛋白是否作为SnRK1的磷酸化底物来转导葡萄糖信号,以及它们如何与MYB调控因子协同作用,仍有待阐明。该研究围绕PbSnRK1、PbTCP13和PbMYB11三个核心组分,综合利用酵母双杂交筛选、磷酸化质谱鉴定、无细胞降解实验和遗传上位性分析等手段,系统解析了葡萄糖响应的梨果实细胞木质化形成石细胞的调控机制。
PbSnRK1介导葡萄糖依赖的木质素合成双向调控
研究者以浓度梯度葡萄糖(0%-6%)处理梨果实愈伤组织,发现木质素含量随葡萄糖浓度升高呈剂量依赖性增加,在4%葡萄糖时达到峰值,苯丙烷途径关键结构基因的表达也呈现相同的剂量响应模式。等渗甘露醇对照处理排除了渗透胁迫的干扰,证实这是葡萄糖特异性的信号效应。对先前发表的转录组数据(Jiao et al., 2022)分析显示,PbSnRK1表达水平与木质素含量呈最强负相关,SnRK1特异性抑制剂T6P处理进一步削弱了葡萄糖诱导的木质素积累,表明该过程主要依赖于PbSnRK1介导的信号通路。
对14个石细胞含量差异显著的梨品种进行全发育期(花后15-100天)追踪,发现所有品种中木质素和石细胞含量均呈单峰变化模式,而葡萄糖含量持续积累,二者呈显著负相关(R²=0.3915)。分层分析显示,高石细胞品种中葡萄糖与木质素的负相关性(R²=0.4544)强于低石细胞品种(R²=0.2898),表明该关联在木质化动态范围更大的基因型中更为显著。在'酥梨'果实中,PbSnRK1的表达峰值与早期快速木质化阶段吻合,且与内源葡萄糖含量负相关,提示PbSnRK1是果实体内葡萄糖信号的内源转导者和石细胞木质素代谢的关键调控节点。
功能实验表明,PbSnRK1对木质素合成实行严格的葡萄糖浓度依赖性双向调控:在1%低糖条件下,过表达PbSnRK1显著促进木质素和石细胞积累,沉默PbSnRK1则抑制木质化;在4%高糖条件下,效应完全反转。激酶失活突变体PbSnRK1T175A(T-loop关键位点Thr175突变为丙氨酸)完全丧失了调控功能,表明该双向调控严格依赖激酶活性。在拟南芥中异源表达PbSnRK1也得到保守表型,进一步证实该调控严格依赖葡萄糖信号。该研究打破了以往糖作为碳源单纯促进木质素沉积的认知,揭示了葡萄糖浓度作为分子开关双向调控石细胞木质化的全新机制。
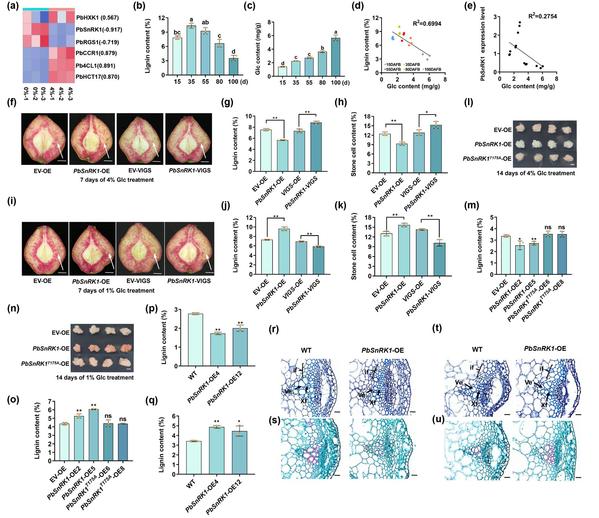
图1.PbSnRK1介导葡萄糖依赖的木质素合成双向调控
PbSnRK1与PbTCP13互作并差异调控其功能
以PbSnRK1为诱饵进行酵母双杂交文库筛选,鉴定出Class I亚家族TCP转录因子PbTCP13为候选互作蛋白。酵母双杂交、荧光素酶互补成像(LCI)、双分子荧光互补(BiFC)和GST pull-down实验在体外和体内证实了PbSnRK1与PbTCP13的物理互作,且二者共定位于细胞核。功能分析显示,PbTCP13是木质素合成的负调控因子:在4%葡萄糖条件下,过表达PbTCP13的梨果实、梨愈伤组织和拟南芥均表现出木质素沉积减弱、次生细胞壁变薄,沉默PbTCP13则促进木质化。机制上,酵母单杂交(Y1H)和电泳迁移率变动分析(EMSA)证实PbTCP13直接结合木质素关键结构基因PbCCR1启动子上的TGGGCT基序;双荧光素酶报告基因实验进一步证明PbTCP13抑制PbCCR1的转录活性。这种Class I TCP转录因子负调控木质素的功能,拓展了TCP家族在次生细胞壁代谢中的功能谱,揭示了Class I与Class II TCP在木质素调控中的功能分化与拮抗作用。
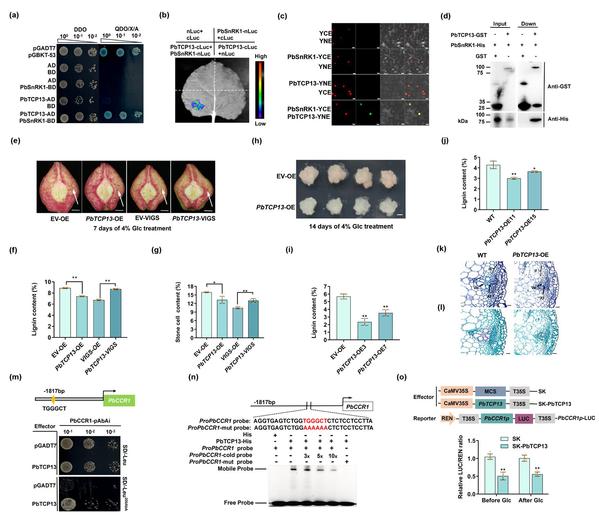
图2.PbSnRK1差异调控PbTCP13以葡萄糖依赖方式调控木质素合成
PbSnRK1磷酸化PbTCP13的Ser265位点并促进其降解
体外激酶实验(Phos-tag凝胶)证实PbSnRK1可直接磷酸化PbTCP13,LC-MS/MS质谱鉴定出Ser265为候选磷酸化位点。该位点在多种植物的TCP13同源蛋白中保守。将Ser265突变为丙氨酸(S265A)后,PbSnRK1对PbTCP13的磷酸化几乎完全消失,证实Ser265是PbSnRK1磷酸化PbTCP13的主要位点。无细胞蛋白降解实验表明,PbTCP13通过26S蛋白酶体途径降解,且在PbSnRK1过表达材料中降解明显加快。关键的是,该磷酸化-降解调控具有葡萄糖浓度依赖性:在1%低糖条件下,S265A突变体的降解速率显著慢于野生型;在4%高糖条件下,二者无显著差异。这表明低糖激活PbSnRK1,磷酸化PbTCP13并促进其经26S蛋白酶体途径降解;高糖抑制PbSnRK1,PbTCP13蛋白得以稳定积累,抑制木质素合成。
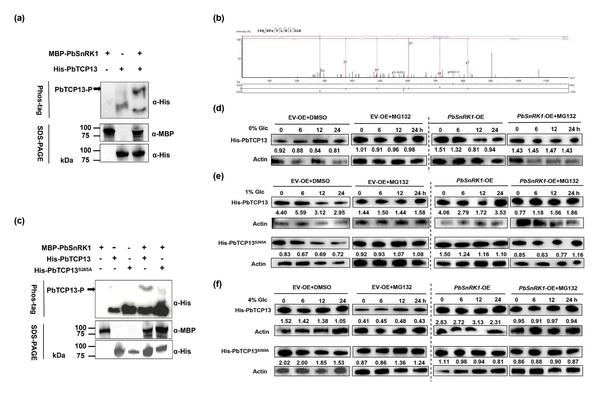
图3. PbSnRK1响应葡萄糖磷酸化PbTCP13并促进其降解
PbMYB11作为PbTCP13互作的木质素激活因子被鉴定
通过对PbSnRK1过表达和空载体对照愈伤组织在低糖/高糖条件下的RNA-seq数据进行加权基因共表达网络分析(WGCNA),研究团队锁定R2R3-MYB转录因子PbMYB11为关键候选基因。PbMYB11在低糖处理的PbSnRK1过表达材料中表达最高,并特异性定位于细胞核内部。PbMYB11结合PbCCR1启动子的AC顺式元件并激活其转录,与PbTCP13的抑制作用相反。PbTCP13与PbMYB11之间存在直接物理互作,二者在细胞核中共定位,形成抑制子-激活子复合体。双荧光素酶实验表明,野生型PbTCP13显著抑制PbMYB11对PbCCR1启动子的激活能力;在低糖条件下共表达PbSnRK1可部分解除这种抑制,但当PbTCP13的Ser265突变为丙氨酸时,解除效应消失。这表明Ser265磷酸化是控制PbTCP13-PbMYB11功能切换的分子开关。
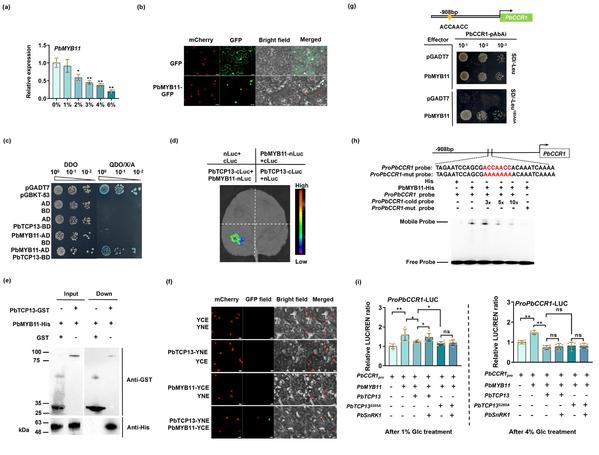
图4. PbSnRK1磷酸化PbTCP13调控其与PbMYB11互作及PbCCR1转录
在1%葡萄糖条件下,过表达PbMYB11的梨果实和愈伤组织木质素含量及石细胞含量显著升高,沉默PbMYB11则导致相反表型,表明PbMYB11是低糖特异性的正调控因子。拟南芥异源表达PbMYB11进一步验证了这一功能。
PbSnRK1-PbTCP13-PbMYB11模块构成葡萄糖响应的分子开关
为明确三个组分的遗传学上下游关系,研究团队构建了系列双转基因梨愈伤组织,并通过果实瞬时共转化实验进行了验证。低糖条件下,PbSnRK1过表达促进的木质素积累可被PbTCP13共表达恢复至对照水平;PbTCP13过表达的抑制效应可被PbMYB11共表达逆转。单独沉默PbMYB11造成的木质素减少,即使同时沉默PbTCP13也无法补救。这些结果明确了PbTCP13作用于PbSnRK1下游,PbMYB11作用于PbTCP13下游,三者构成一条完整的信号级联通路。该研究提出了葡萄糖浓度依赖的分子开关模型:在果实发育早期(低糖环境),PbSnRK1激酶活性高,磷酸化PbTCP13的Ser265位点并促使其经26S蛋白酶体降解,解除对PbMYB11的抑制,激活PbCCR1等木质素结构基因表达,驱动石细胞形成和木质化;随着果实发育、葡萄糖不断积累(高糖环境),PbSnRK1活性受抑,PbTCP13蛋白稳定积累,通过直接抑制PbCCR1转录及与PbMYB11物理互作抑制其转录激活活性,限制过度木质化。这一磷酸化依赖的开关将高耗能的木质素代谢精确校准到细胞碳能状态上,确保木质素沉积与果实发育阶段的能量供给相匹配。
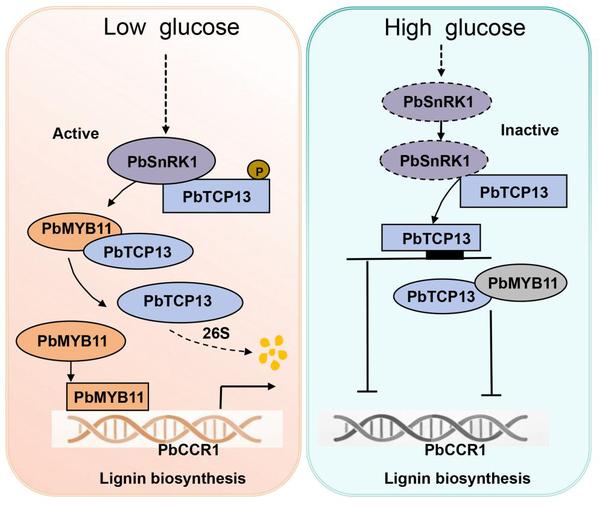
图5.工作模型:葡萄糖-PbSnRK1-PbTCP13-PbMYB11模块调控梨石细胞木质素合成
该研究首次在分子层面阐明了葡萄糖信号剂量依赖性地控制果树次生细胞壁代谢的机制,实现了能量感知与木质素合成的直接耦联,为解析肉质果实中碳分配与次生细胞壁沉积的协调机制提供了重要范例。
天天a片
博士生何嘉楠为论文第一作者,王旭旭、Abdul Basit、李文、晁佳慧、赵文宇、牛明旭、严鑫、于园辉等参与了本研究,陶书田教授为通讯作者,天天a片
张绍铃院士指导相关工作,日本名古屋大学Katsuhiro Shiratake博士、加拿大EIM科技Khanizadeh Shahrokh博士协助开展相关工作。该研究得到江苏省重点研发计划、江苏省研究生科研创新计划、国家现代农业产业技术体系(梨)、国家自然科学基金等项目的资助。
论文链接://doi.org/10.1111/pbi.70770
(来源:天天a片
)